Supervivencia en equipo #3. Contrailuminación simbiótica: el camuflaje activo del calamar de cola corta de Hawái
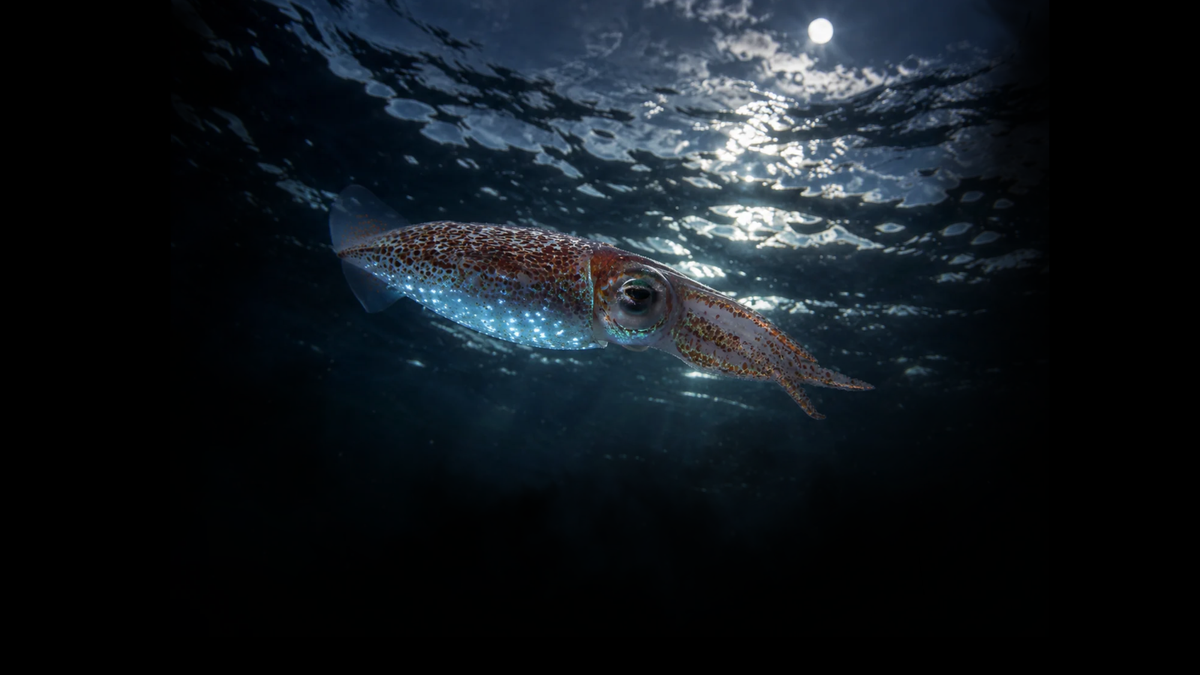
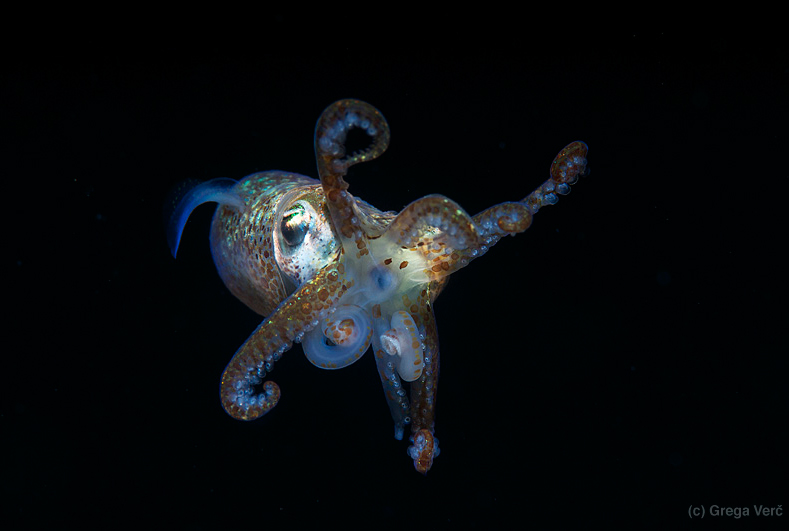
En las aguas costeras poco profundas de los archipiélagos de las islas Hawái e islas Midway (Pacífico central) habita un pequeño cefalópodo que ha desarrollado una estrategia de camuflaje extraordinaria. A diferencia de otros animales que utilizan pigmentos o estructuras corporales que juegan con la silueta o cambios de coloración para confundirse con el entorno, este calamar recurre a una solución mucho menos habitual: utilizar la luz producida por bacterias que viven en el interior de su cuerpo.
Se trata de Euprymna scolopes, conocido como calamar de cola corta de Hawái, un animal nocturno que mantiene una estrecha relación simbiótica con una bacteria bioluminiscente, Aliivibrio fischeri.
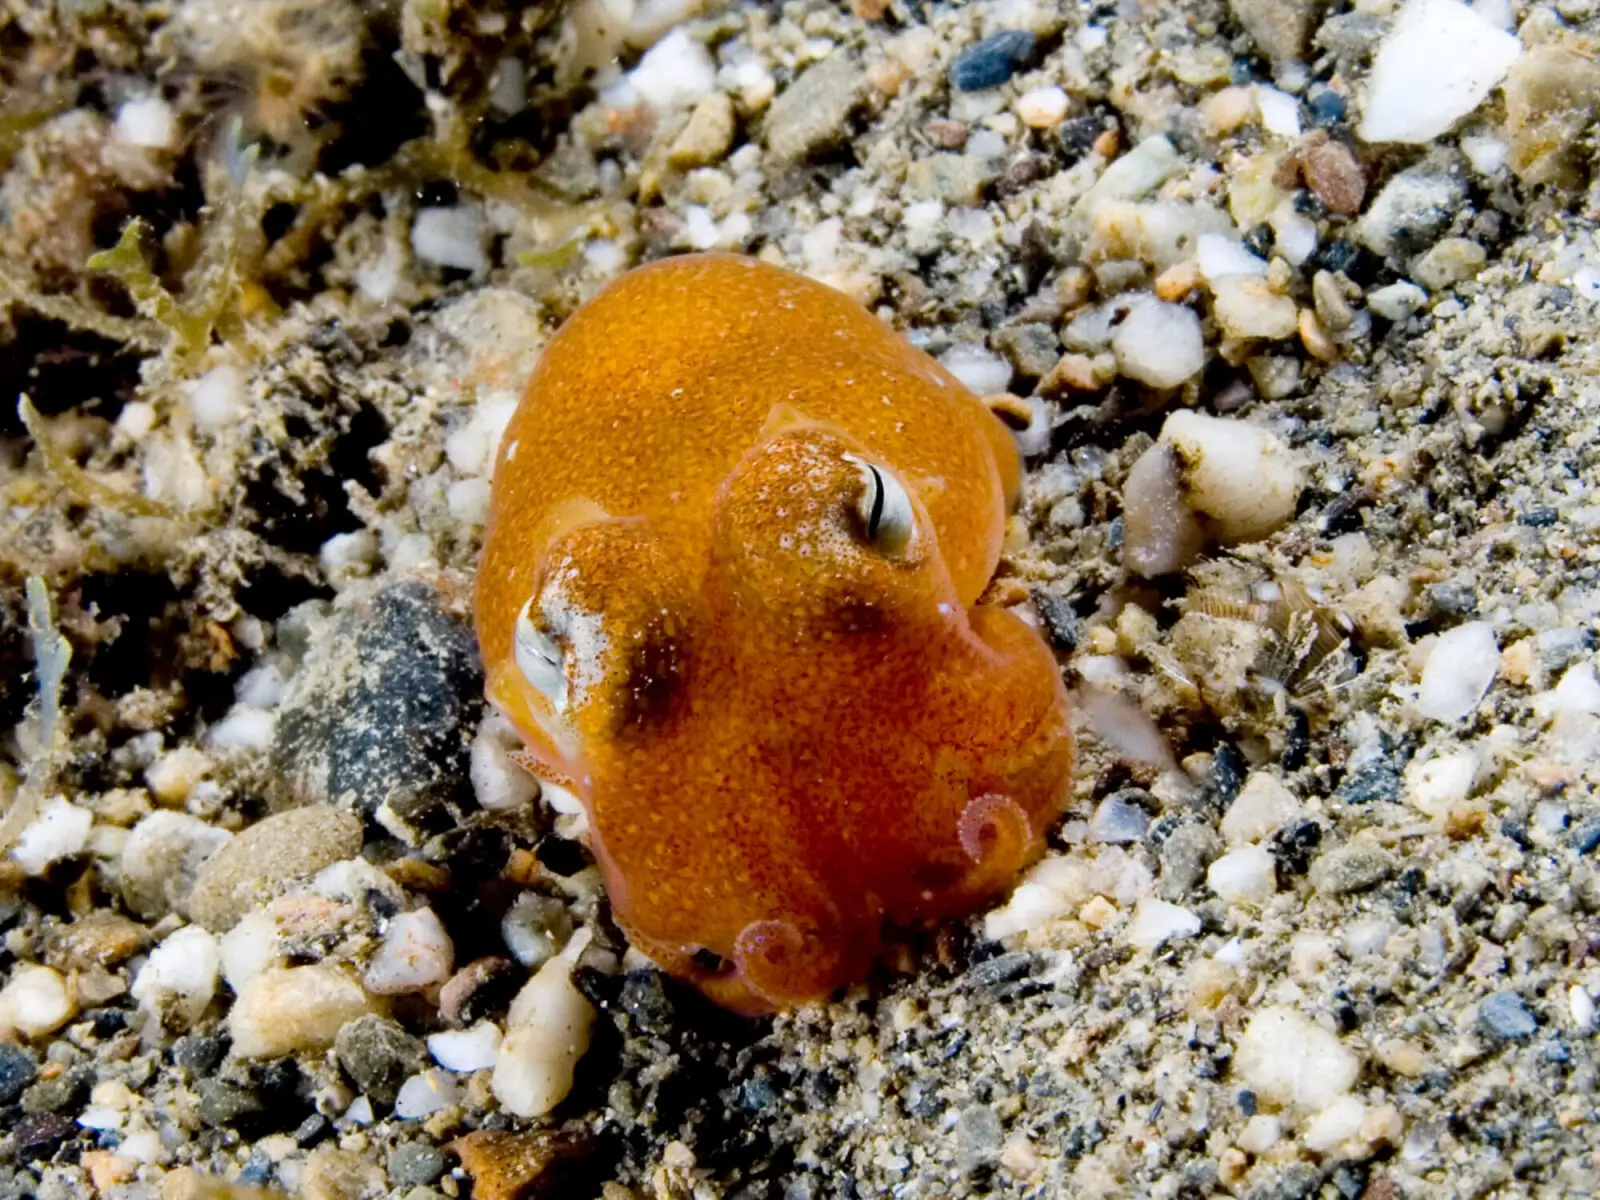
La asociación permite al cefalópodo reducir el contraste de su silueta frente a la iluminación que llega desde la superficie del océano, dificultando su detección desde abajo mediante un fenómeno conocido como contrailuminación. Aunque esto ya resulta sorprendente por sí sólo, lo verdaderamente interesante de esta relación no es únicamente el camuflaje. Ambos organismos han desarrollado mecanismos bioquímicos, anatómicos y fisiológicos que permiten establecer, regular y mantener su asociación durante toda la vida del animal.
No obstante, antes de entrar de lleno en la descripción del calamar de cola corta de Hawái, así como en su relación con la bacteria que permite esta bioluminiscencia, vamos a describir primero en qué consiste este tipo de camuflaje, ya que quizá no todos los lectores estén familiarizados.
El contrasombreado y la contrailuminación
Por ser algo más común en el mundo animal, describiremos en primer lugar el contrasombreado, empleado tanto en animales terrestres como en animales marinos.
Contrasombreado
El contrasombreado, también denominado contracoloración o contrasombra, es un tipo de camuflaje cuyo patrón se torna más oscuro en la parte superior del animal, en contraposición a la inferior, más clara. Se encuentra en mamíferos, reptiles, aves y peces, y su principio reside en que la luz, al incidir generalmente desde arriba, ilumina las regiones superiores otorgando mayor claridad que a las inferiores – más oscuras –. Este patrón es fácilmente reconocible, otorgando esa sensación de volumen que hace que sea más sencillo de detectar por otros animales.
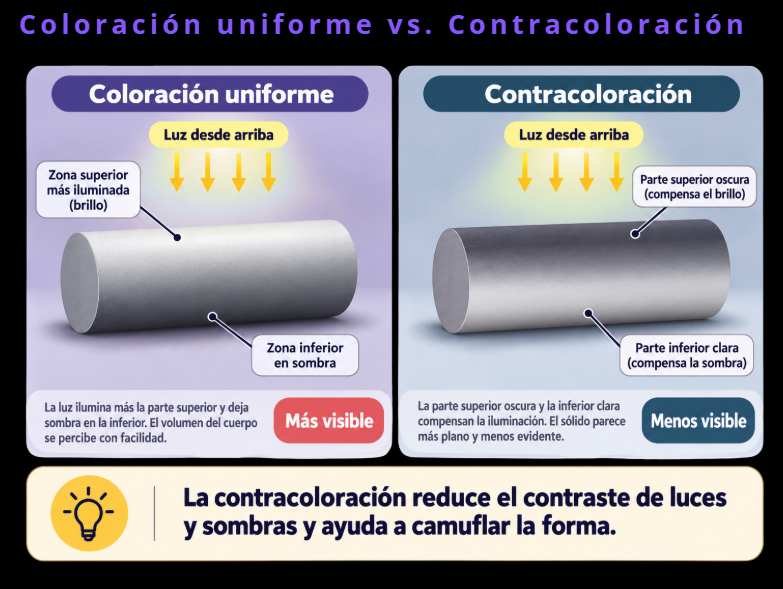
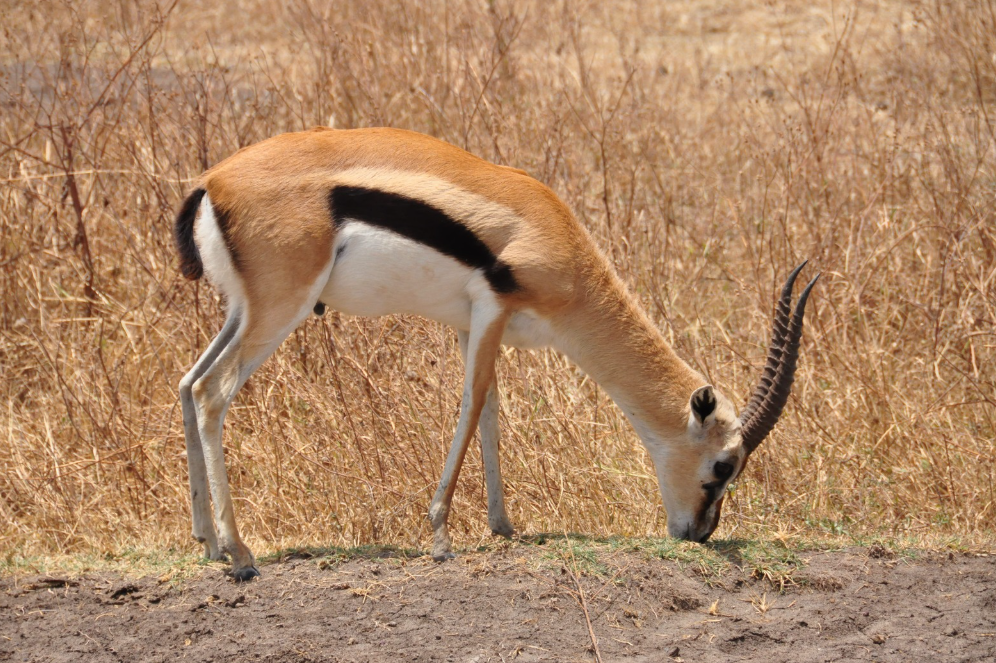
Un ejemplo muy ilustrativo de animal terrestre con patrón de contrasombreado sería la gacela de Thomson (Eudorcas thomsonii). En la gacela el dorso es marrón oscuro, puesto que es donde recibe más luz solar, y de este modo la pigmentación reduce la claridad aparente. En cambio, el vientre es prácticamente blanco, ya que al recibir menos iluminación, su elevada reflectancia compensa parcialmente la sombra.
El resultado de todo esto es que disminuye el gradiente de luminosidad que delataría el volumen del cuerpo, aunque como es obvio, la eficacia del camuflaje depende del entorno y de la dirección de la luz.
Las aves también lo emplean con relativa frecuencia, y un ejemplo podría ser la archiconocida golondrina común (Hirundo rustica).
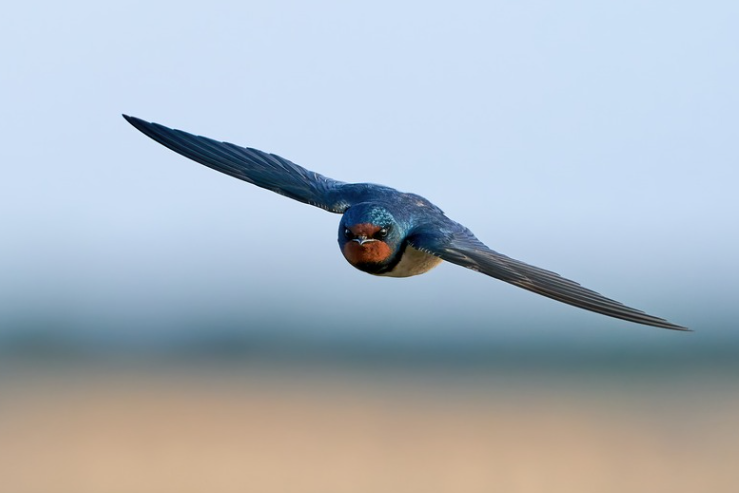
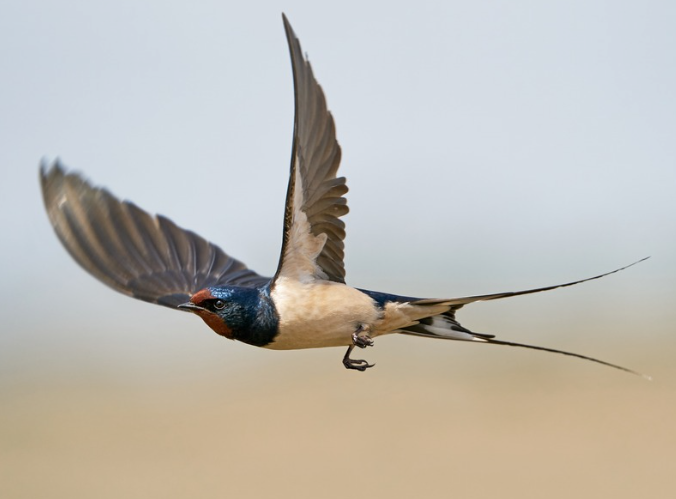
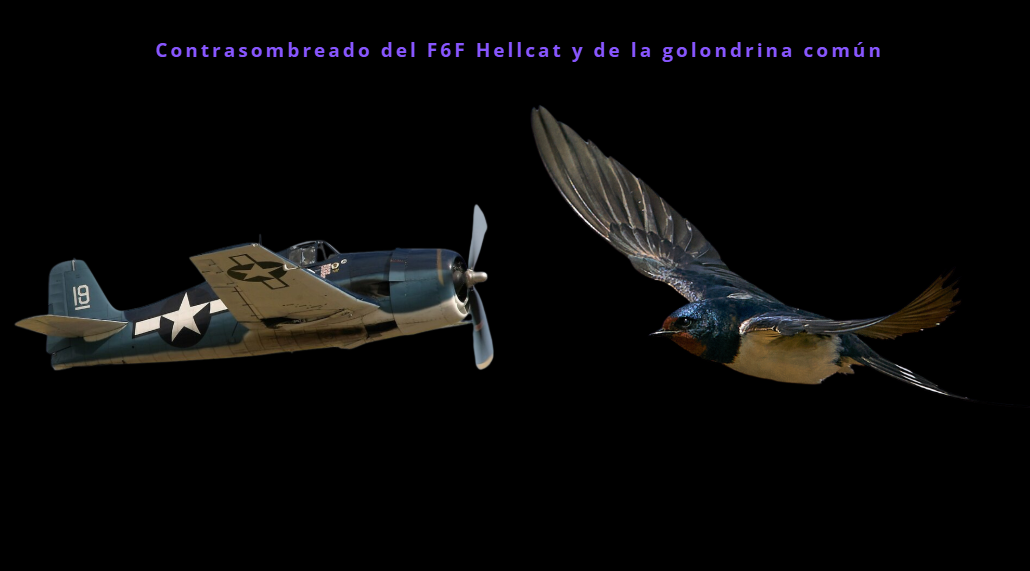
Además, en el caso de las aves, al igual que ocurre con algunos peces, el contrasombreado resulta potenciado, puesto que actúan dos mecanismos complementarios: la compensación del autosombreado y la reducción del contraste con el entorno cuando el ave se observa desde arriba o desde abajo. Esta combinación ha sido ampliamente empleada en aeronaves militares como ilustra la imagen siguiente, en la que se muestra el caza estadounidense de la Segunda Guerra Mundial F6F Hellcat junto a la golondrina común, previamente mostrada. Este caza operaba fundamentalmente en escenarios navales, de ahí que su parte superior sea azul marino, lo cual dificultaba su detección si este era divisado desde mayor altura. Por contraparte, el área inferior era mucho más clara, lo que dificultaba su detección desde tierra.
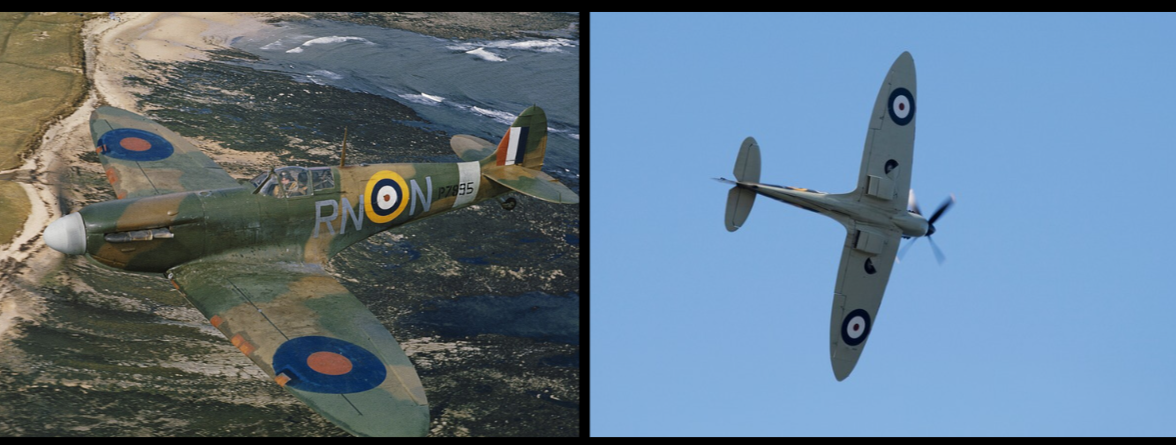
De forma similar, el caza británico de la Segunda Guerra Mundial Spitfire generalmente se pintaba con un color grisáceo en la parte inferior, mientras que la parte superior solía ser en un patrón de tonos boscosos, con tal de mimetizarse con la superficie verdosa del norte y centro de Europa.
Por último, destacar que el contrasombreado es especialmente frecuente entre los animales marinos, donde los pronunciados contrastes de iluminación favorecen la eficacia de esta estrategia de camuflaje. La luz solar, al penetrar desde la superficie, genera condiciones visuales muy diferentes según la dirección de observación. Así, mientras que un animal visto desde arriba se recorta sobre las aguas más oscuras de las profundidades, desde abajo su silueta contrasta con la luminosidad procedente de la superficie. Esta diferencia resulta fundamental para comprender la distribución de la pigmentación dorsal y ventral de numerosas especies marinas.
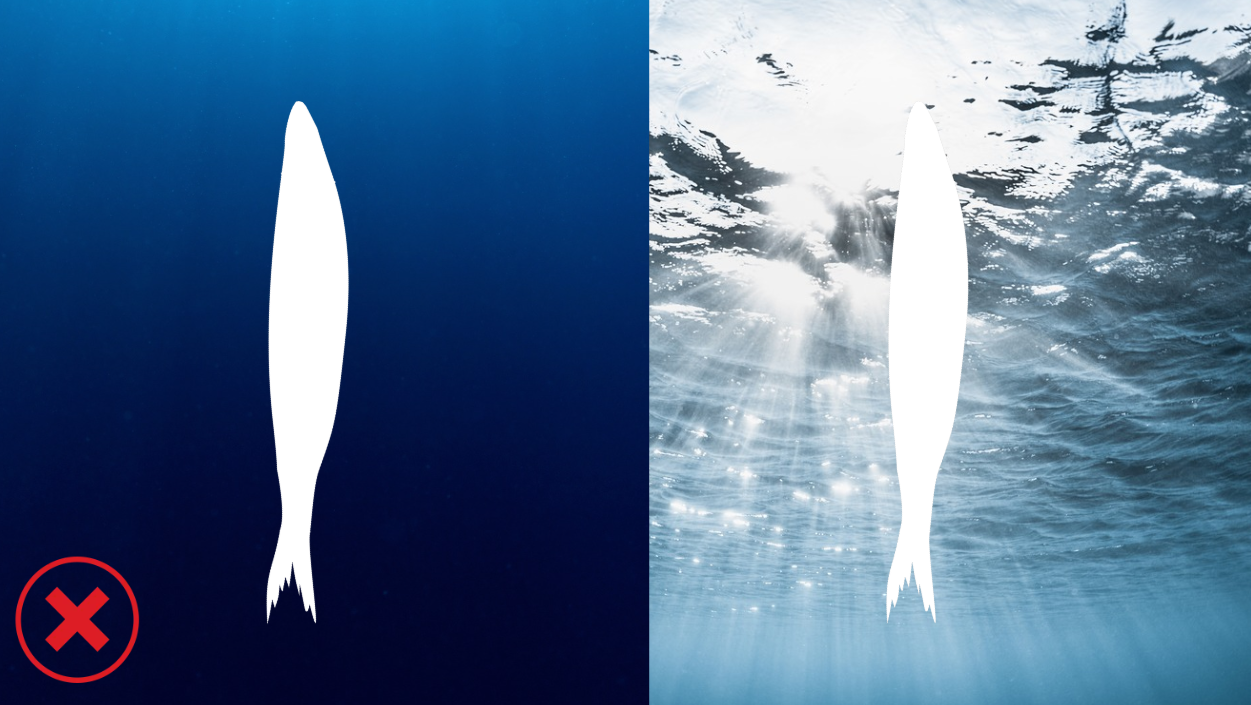
Una superficie excesivamente blanca, vista desde arriba puede generar un contraste muy pronunciado que facilite la detección.
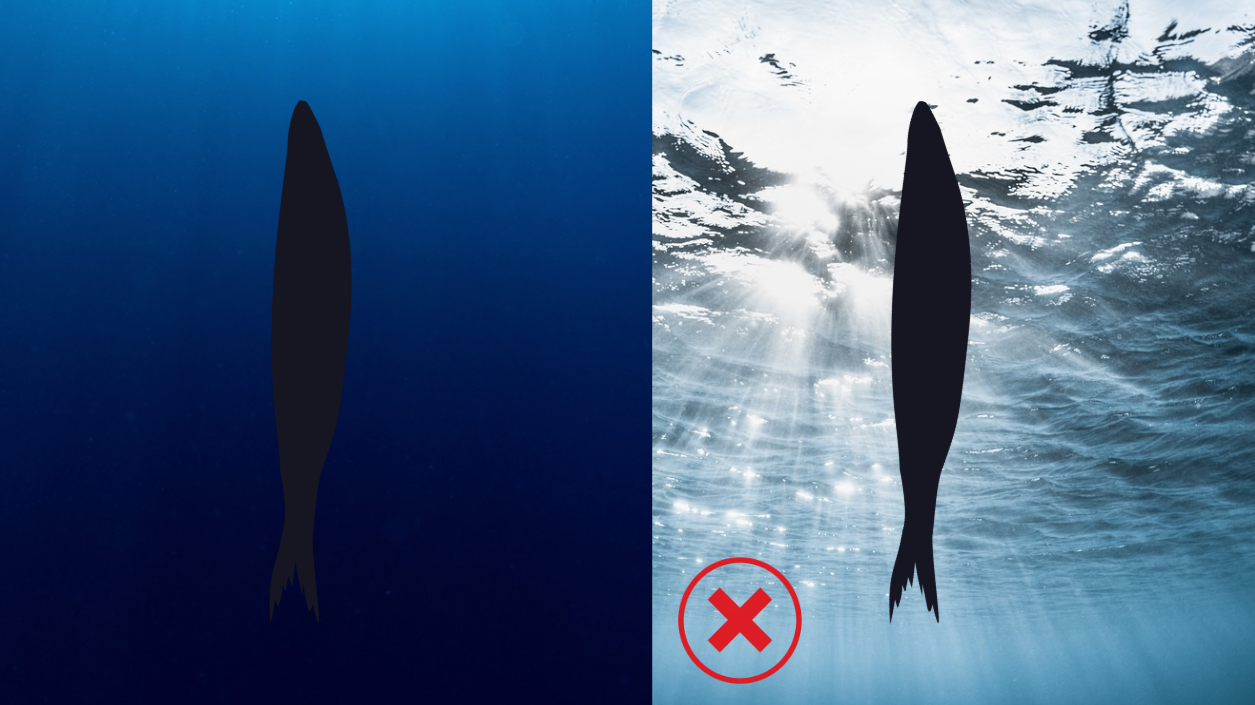
El caso inverso es igualmente llamativo, una superficie demasiado oscura al contraluz genera un contraste muy alto.
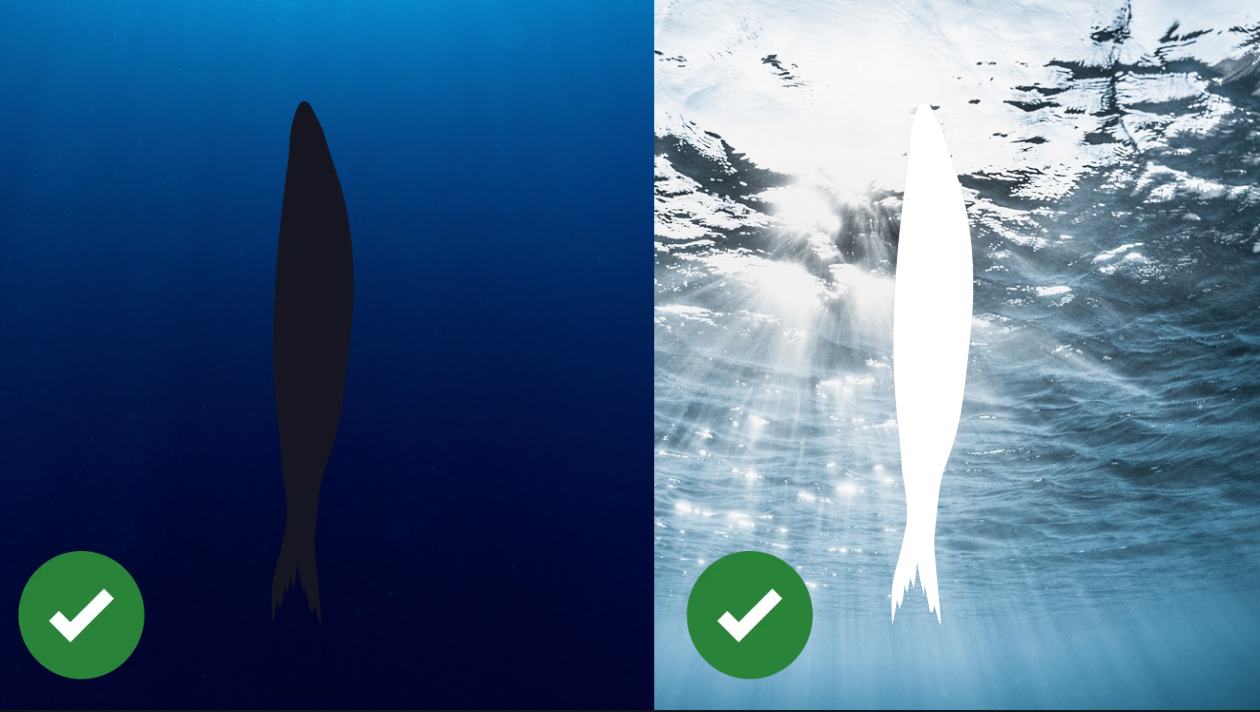
Por lo tanto, desde el punto de vista del camuflaje, a un pez le interesaría tener una región superior oscura que se mimetice con el fondo, frente a una superficie más clara en la zona ventral (dirigida hacia el fondo).
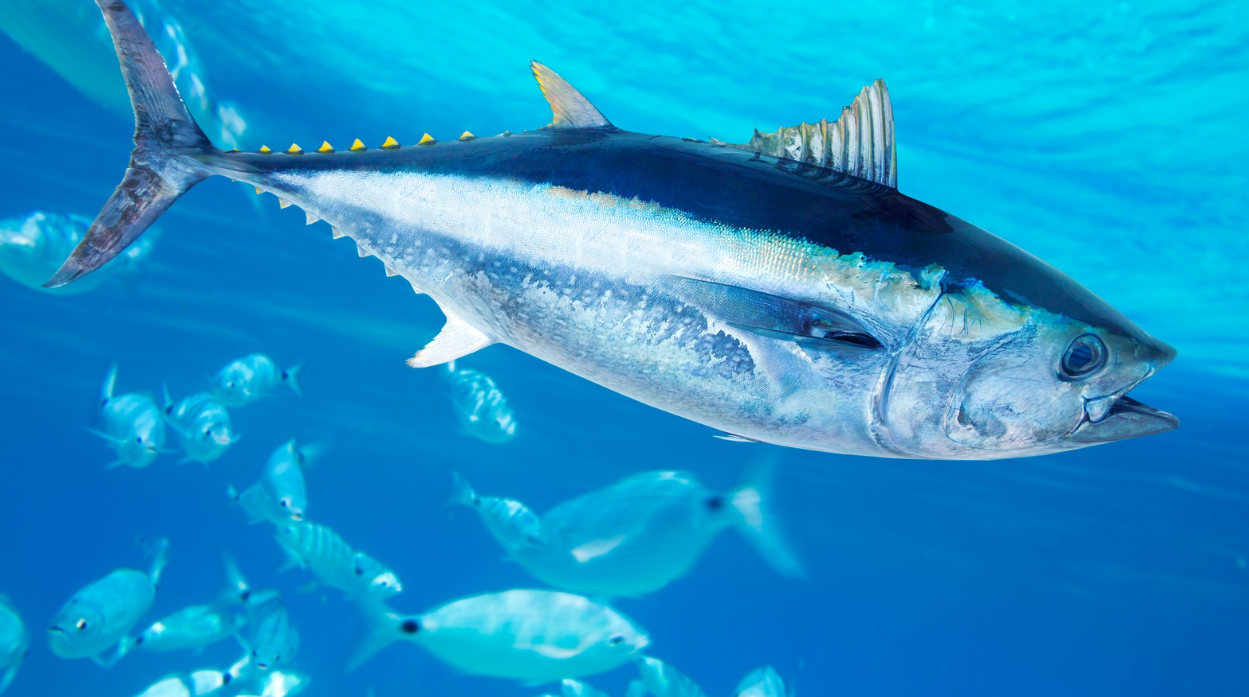
Un ejemplo real que ilustra esto es el del atún rojo (Thunnus thynnus), cuya zona superior es de un azul oscuro intenso, mientras que la parte inferior es de un plateado idóneo para desdibujarse con el resplandor que genera la luz del Sol en la superficie del agua.
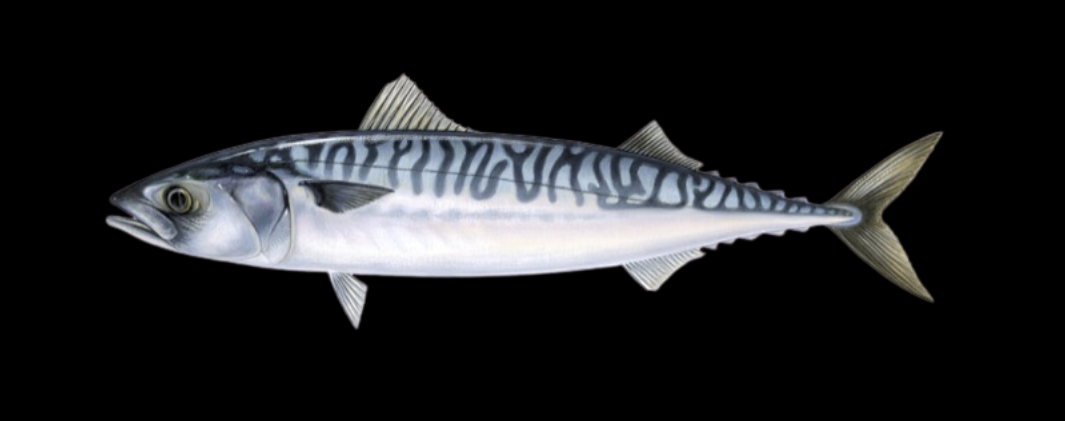
Lo mismo ocurre con la caballa (Scomber scombrus), cuya mitad superior es de un azulado con un patrón atigrado en negro, en contraposición a la región ventral de un blanco plateado.
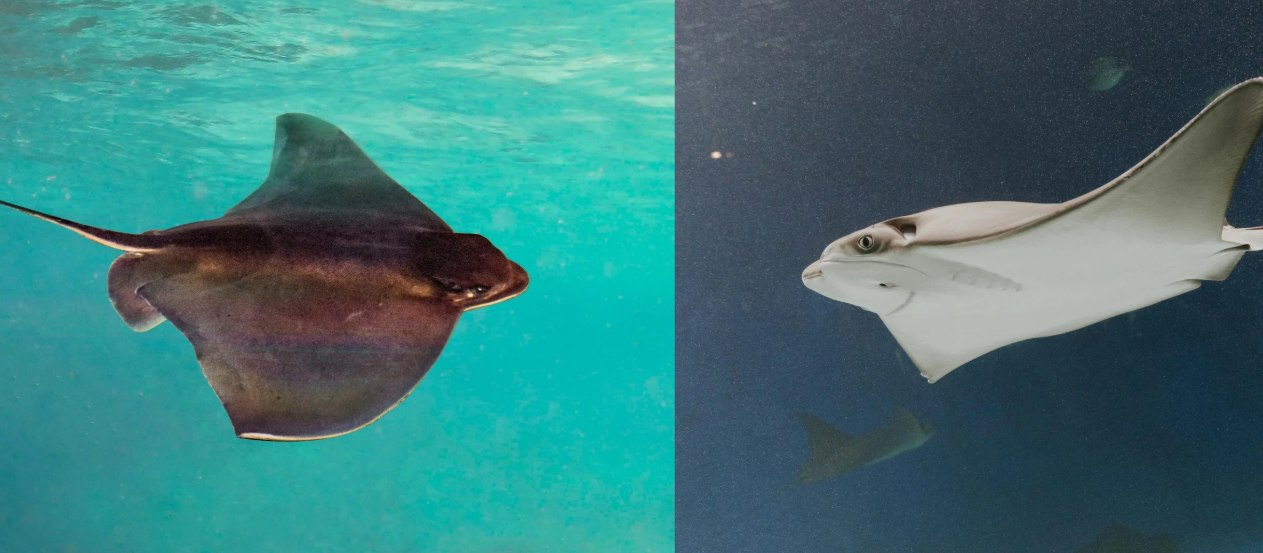
Numerosos tiburones también presentan patrones similares de contrasombreado, y en el caso de las rayas y las mantarrayas destaca el fuerte contraste, mostrando un vientre prácticamente blanco, frente a tonos mucho más oscuros en su parte superior, que pueden ir del azul o el gris oscuro a tonos más propicios para camuflarse en fondos arenosos.
Contrailuminación
A diferencia del contrasombreado, la contrailuminación es exclusiva de animales marinos. Este método consiste en un sistema de camuflaje activo que genera una luz que intenta simular tanto el brillo como la longitud de onda del fondo en el que se desea mimetizarse.
De forma análoga a lo que ya hemos comentado en el método anterior, los animales que se ubican en la zona media del agua suelen ser percibidos como demasiado oscuros frente al fondo brillante de la superficie del agua cuando es visto desde abajo.
Para contrarrestar este efecto, determinados organismos han desarrollado órganos especializados capaces de producir luz, denominados fotóforos. Estas estructuras se distribuyen principalmente por la región ventral del cuerpo y emiten una luminosidad dirigida hacia las aguas inferiores. De esta manera, la luz generada sustituye parcialmente a la iluminación ambiental que el propio cuerpo del animal estaría bloqueando, reduciendo el contraste de su silueta frente a la superficie iluminada. Sin embargo, lograr un camuflaje eficaz requiere algo más que producir luz, y es que la radiación emitida debe aproximarse a la intensidad, distribución angular y composición espectral de la iluminación ambiental. Esta última condición resulta especialmente importante en el medio marino, donde la absorción selectiva de las diferentes longitudes de onda provoca que la luz disponible a cierta profundidad esté dominada por tonalidades azuladas y verdosas.
Además, las condiciones de iluminación no son constantes. La profundidad, la nubosidad, la hora del día e incluso el movimiento del animal pueden modificar el fondo luminoso que debe reproducirse. Por ello, algunas especies cuentan con mecanismos fisiológicos capaces de regular la intensidad de sus emisiones, convirtiendo la contrailuminación en un sistema de camuflaje dinámico.
Uno de los ejemplos más representativos aparece en los peces hacha del género Argyropelecus, pequeños peces mesopelágicos caracterizados por sus cuerpos lateralmente comprimidos y sus numerosos fotóforos ventrales. Estas estructuras emiten luz hacia abajo y presentan adaptaciones ópticas que ayudan a orientar la radiación producida. Algunas especies, como Argyropelecus aculeatus, poseen incluso un fotóforo dirigido hacia el propio ojo. Se ha propuesto que esta disposición permite utilizar la luz emitida como referencia para ajustar la luminosidad ventral a la iluminación del entorno, aunque su funcionamiento exacto todavía continúa investigándose.
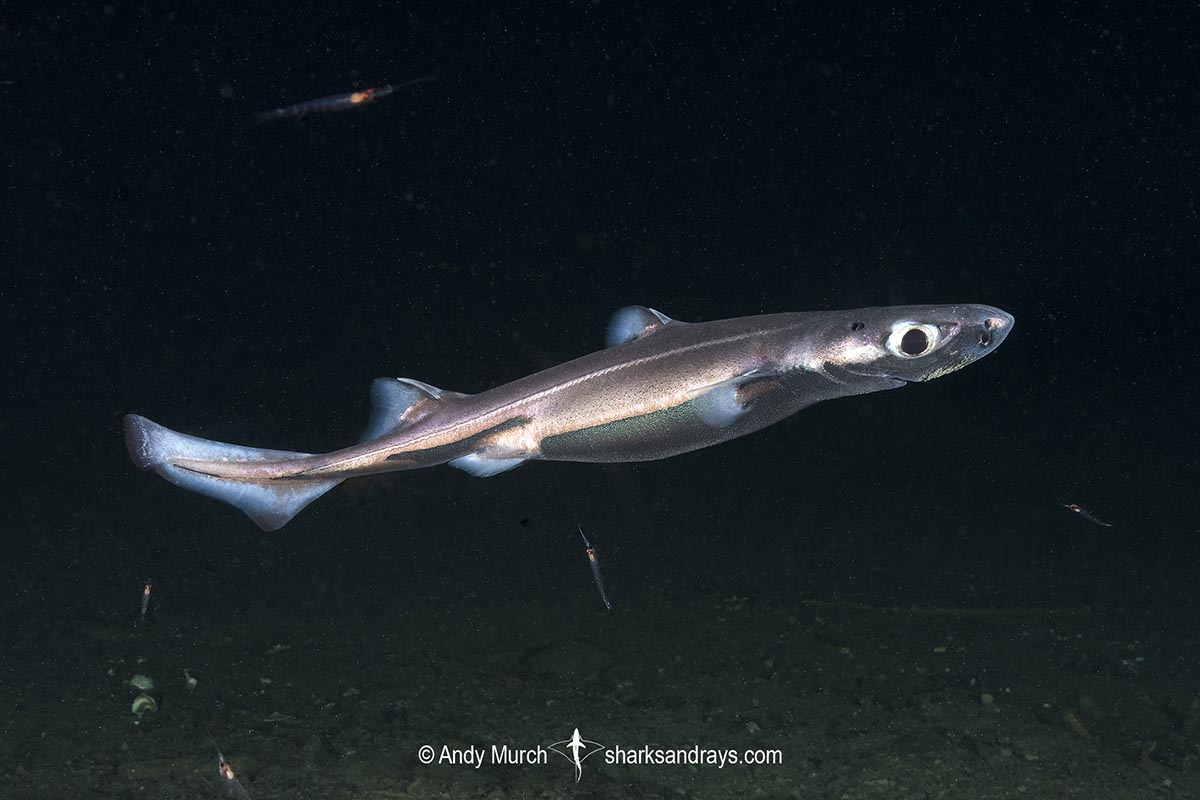
La contrailuminación también está presente entre los tiburones. El tiburón linterna de vientre aterciopelado (Etmopterus spinax), presente en el Atlántico oriental y el Mediterráneo, posee miles de diminutos fotóforos repartidos por su superficie ventral. Estos órganos producen una luminosidad azul verdosa, con un máximo de emisión próximo a los 486 nanómetros, compatible con las características espectrales de la luz ambiental a determinadas profundidades.
Ejemplar de tiburón linterna de vientre aterciopelado (Etmopterus spinax)
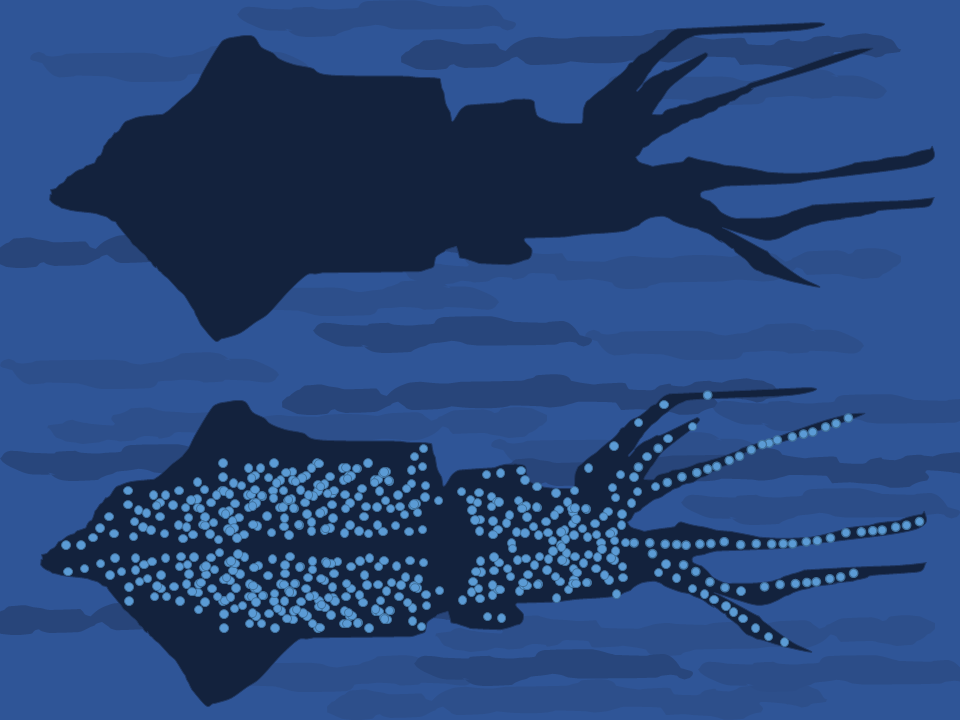
Otro ejemplo especialmente llamativo es el calamar luciérnaga (Watasenia scintillans), un pequeño cefalópodo de apenas unos centímetros que habita las aguas del océano Pacífico occidental, especialmente alrededor de Japón. Su cuerpo está cubierto por cientos de diminutos fotóforos capaces de emitir luz azulada y verdosa, distribuidos principalmente por la región ventral, alrededor de los ojos y en los extremos de determinados brazos. Sin embargo, no todos cumplen necesariamente la misma función. Mientras los fotóforos ventrales contribuyen a la contrailuminación, reproduciendo parcialmente la luminosidad ambiental para dificultar su detección desde las profundidades, los situados en los brazos pueden producir destellos mucho más intensos, posiblemente relacionados con la comunicación y otras funciones defensivas. Además, investigaciones recientes han demostrado que este calamar es capaz de regular la emisión de sus fotóforos en respuesta a variaciones de la iluminación exterior mediante estructuras fotosensibles especializadas.
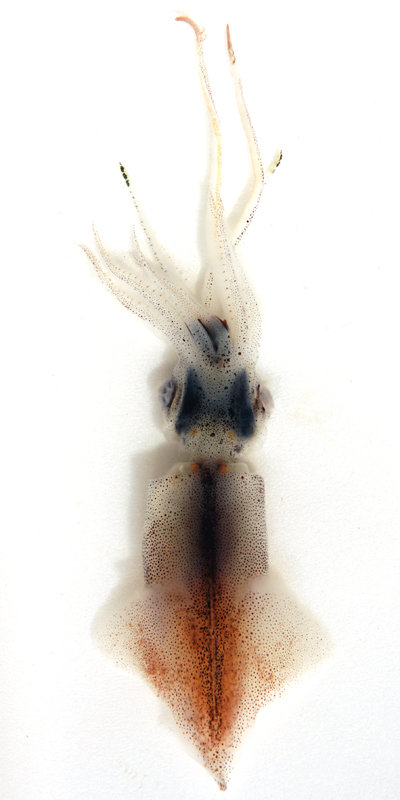
Principio del efecto que causaría el camuflaje de contraluz del calamar luciérnaga.
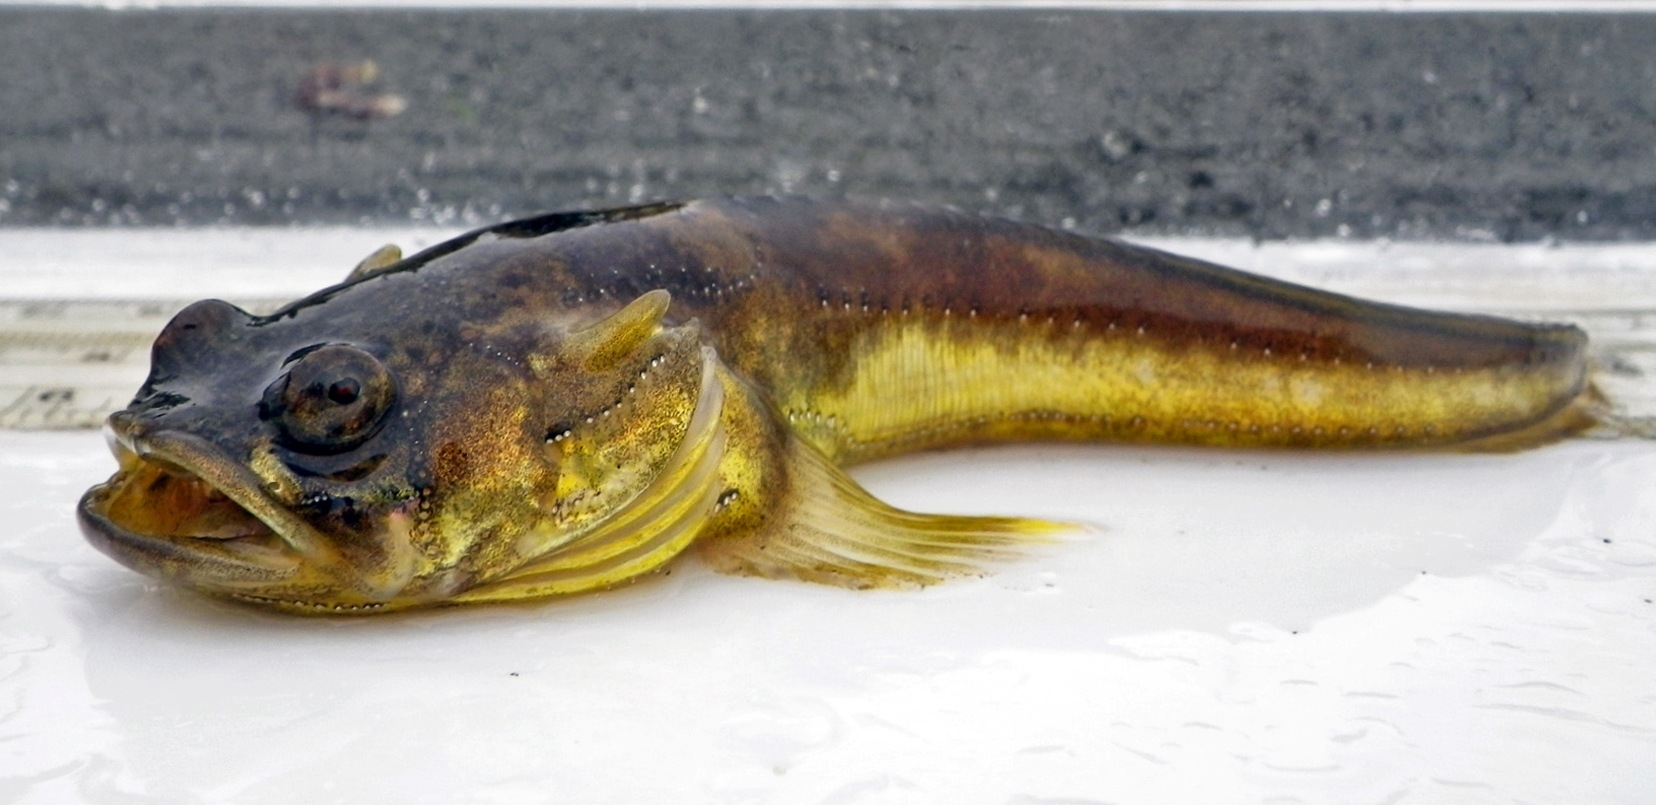
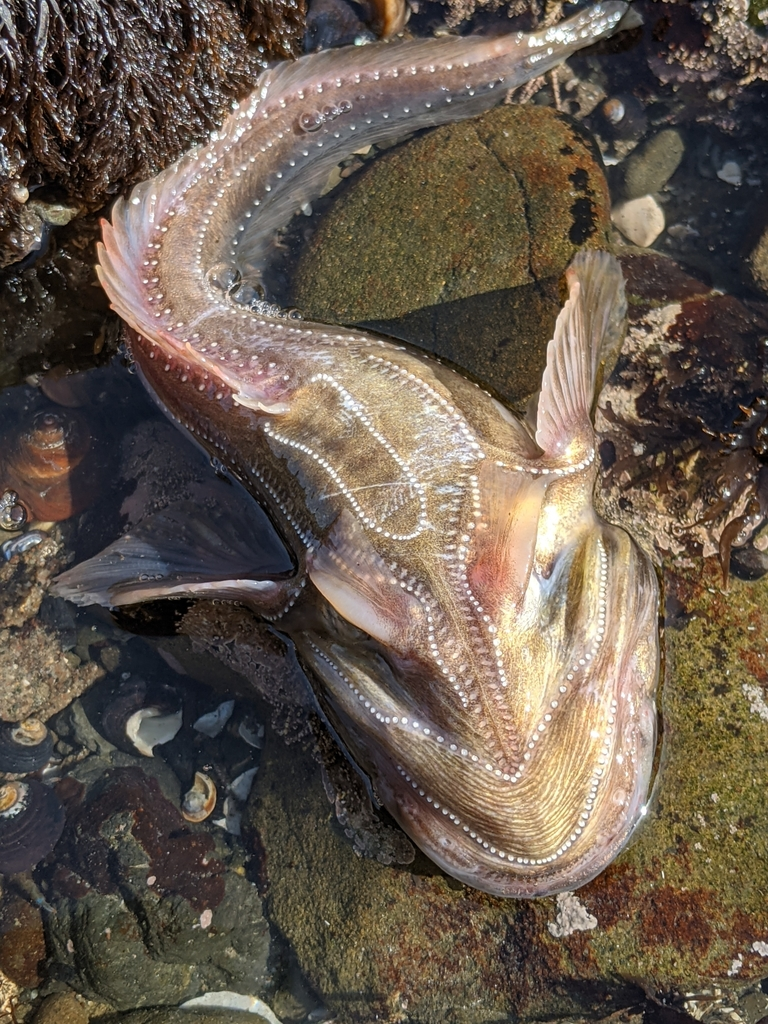
También resulta destacable el caso del pez guardiamarina (Porichthys notatus), cuyos fotóforos ventrales pueden reducir la visibilidad de su silueta mediante un patrón luminoso discontinuo. En esta especie, la contrailuminación no necesita reproducir perfectamente toda la luz bloqueada por el cuerpo: la propia fragmentación visual del contorno contribuye al camuflaje. De hecho, un estudio experimental observó que, bajo determinadas condiciones de iluminación tenue, los juveniles bioluminiscentes sufrían aproximadamente la mitad de depredación que los individuos que no emitían luz.
Ejemplar de pez guardiamarina (Porichthys notatus)
Ejemplar adulto de pez guardiamarina (Porichthys notatus) con los fotóforos visibles.
Estos ejemplos evidencian que la evolución ha desarrollado soluciones anatómicas y fisiológicas diferentes para resolver un mismo problema óptico. Numerosas especies marinas han desarrollado, de manera independiente, estructuras capaces de manipular su propia luminosidad y reducir la probabilidad de ser detectados.
La contrailuminación representa, por tanto, una forma de camuflaje especialmente sofisticada, dado que en lugar de limitarse a reflejar o absorber la luz del entorno, el organismo genera su propia iluminación para confundirse con él. Ahora bien, el animal que protagoniza este artículo utiliza un mecanismo diferente, ya que no produce la luz mediante su propia maquinaria bioquímica.
En su lugar, ha desarrollado una solución evolutiva todavía más sorprendente si cabe: encomendar la producción de luz a otro organismo. Mediante una relación de simbiosis extraordinariamente especializada, este pequeño cefalópodo ha convertido a millones de microorganismos en un sistema de iluminación biológico, capaz de ayudarle a ocultar su silueta bajo las aguas nocturnas.
El calamar de cola corta de Hawái (Euprymna scolopes)
Euprymna scolopes es un pequeño cefalópodo de la familia Sepiolidae que habita principalmente en las aguas costeras poco profundas del archipiélago hawaiano. Aunque recibe el nombre común de calamar, pertenece al grupo de los sepiolidos, cefalópodos estrechamente emparentados con las sepias y los calamares propiamente dichos.
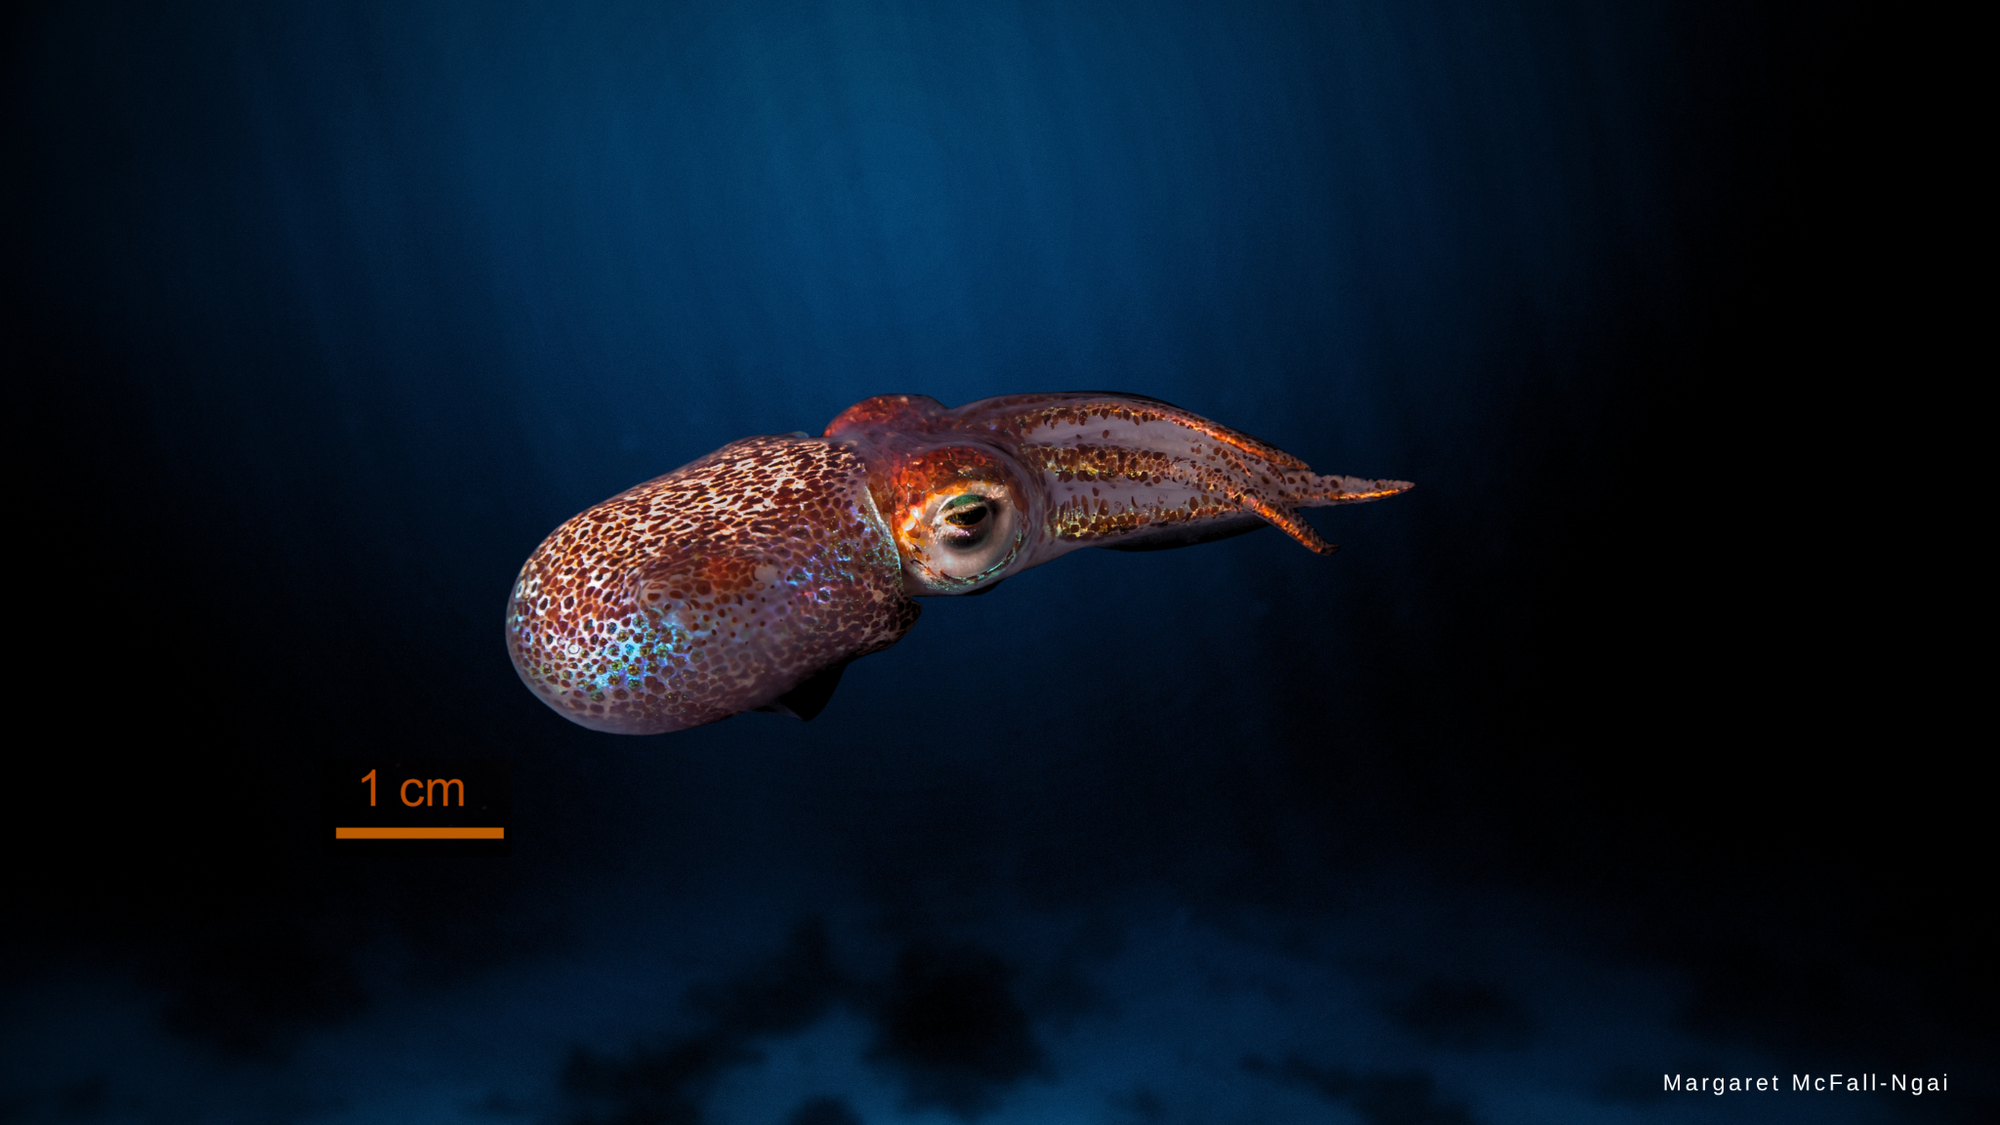
Se caracteriza por presentar un cuerpo redondeado, grandes ojos y ocho brazos acompañados de dos tentáculos especializados en la captura de presas. Su manto alcanza aproximadamente 3 cm de longitud. Los adultos pueden llegar a pesar unos 2,7 g, mientras que los ejemplares recién nacidos apenas pesan alrededor de 0,005 g
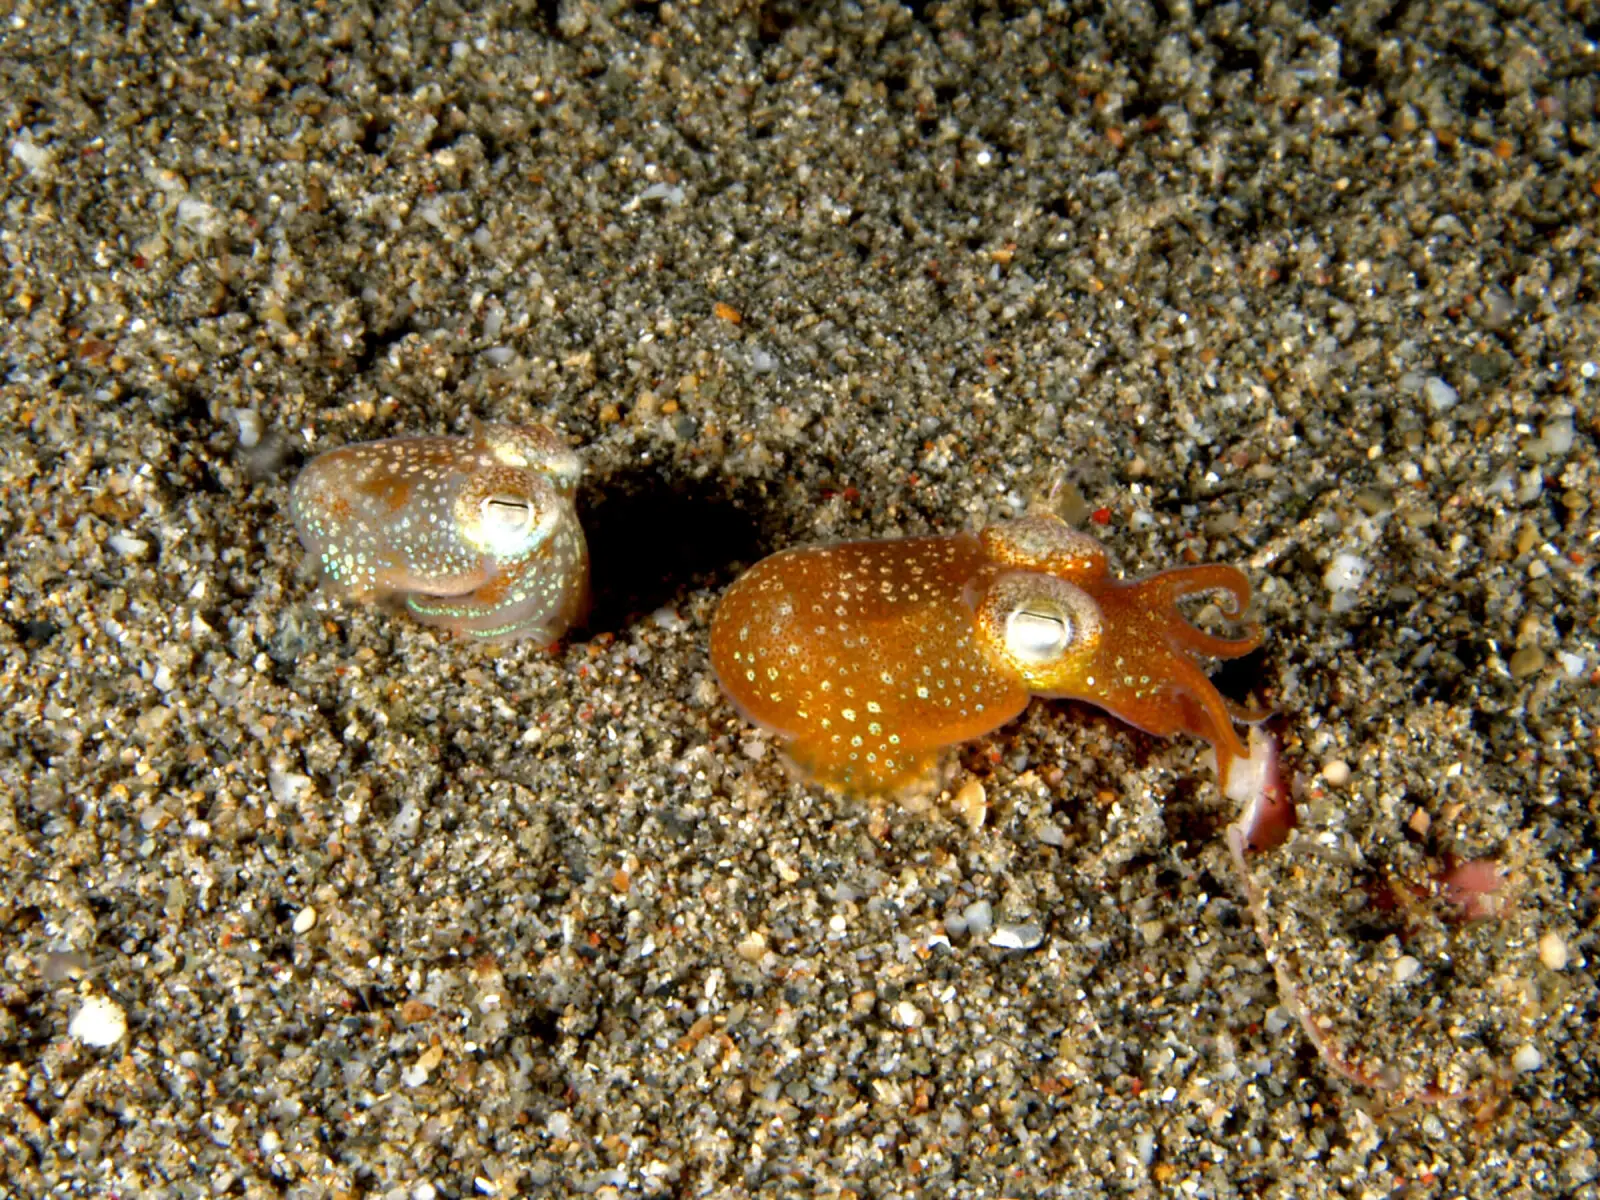
Como otros cefalópodos, presenta cromatóforos, células pigmentarias que permiten modificar su coloración y contribuir al camuflaje.
Un animal de hábitos nocturnos
Durante el día, E. scolopes permanece generalmente enterrado en el fondo arenoso, donde encuentra protección frente a posibles depredadores. Al anochecer abandona su refugio para alimentarse principalmente de pequeños crustáceos, y es precisamente durante estas incursiones nocturnas cuando entra en funcionamiento su mecanismo de camuflaje más característico.
Aunque la noche pueda parecer completamente oscura, bajo el agua sigue existiendo iluminación procedente de la Luna, las estrellas y otras fuentes ambientales. Esta luz penetra desde la superficie y genera un gradiente luminoso que disminuye con la profundidad.
Como consecuencia, un animal situado entre la superficie iluminada y un depredador que observa desde abajo puede destacar como una silueta oscura. Para un cefalópodo de pequeño tamaño que abandona la protección del sustrato durante la noche, esta diferencia de luminosidad puede facilitar su detección.
La solución de Euprymna scolopes consiste en producir luz en la región ventral de su cuerpo para compensar parte de ese contraste.
Una alianza entre un cefalópodo y una bacteria
El responsable de la bioluminiscencia es Aliivibrio fischeri (anteriormente denominada Vibrio fischeri), una bacteria marina capaz de emitir luz mediante reacciones bioquímicas. Esta especie puede encontrarse libre en el medio marino, aunque determinadas poblaciones también establecen asociaciones simbióticas con peces y cefalópodos.
En E. scolopes, las bacterias habitan en un órgano especializado denominado órgano luminoso, situado en la región ventral y asociado anatómicamente al complejo del saco de tinta. En su interior existen cavidades o criptas revestidas por tejido epitelial, donde las bacterias proliferan hasta alcanzar densidades celulares elevadas.
¿Qué obtiene cada organismo?
La relación constituye un ejemplo de simbiosis mutualista, puesto que ambos participantes obtienen beneficios.
Por su parte, el calamar obtiene bioluminiscencia dirigida hacia su región ventral, utilizada para reducir su visibilidad durante la actividad nocturna.
En lo que respecta a las bacterias, obtienen un microambiente protegido dentro del hospedador y nutrientes proporcionados por los tejidos del calamar. Además, encuentran condiciones fisiológicas que favorecen su crecimiento y metabolismo.
A diferencia de las asociaciones nutricionales, como las que existen entre los corales y sus algas simbiontes, el beneficio principal para el calamar no consiste en obtener alimento, sino en disponer de una función óptica que su propio organismo no podría realizar de la misma manera sin las bacterias.
Ahora bien, ¿cómo consigue el animal incorporar a su organismo precisamente la bacteria que necesita?
El reconocimiento: encontrar al socio adecuado entre millones de microorganismos
Los calamares juveniles nacen sin bacterias en su órgano luminoso, por lo que cada nueva generación debe adquirirlas directamente del agua marina, y dicha colonización comienza durante las horas posteriores a la eclosión. Este proceso resulta especialmente complejo porque el océano contiene una enorme diversidad de microorganismos, mientras que el órgano luminoso de E. scolopes establece una asociación extraordinariamente específica con A. fischeri.
En la superficie del órgano luminoso existen estructuras recubiertas de cilios, pequeñas prolongaciones celulares cuyo movimiento genera corrientes microscópicas. Estas corrientes ayudan a concentrar bacterias presentes en el agua sobre una capa de mucosidad producida por el hospedador. Sin embargo, el animal no permite que cualquier microorganismo colonice el órgano.
La selección química de las bacterias
La mucosidad contiene sustancias antimicrobianas y compuestos químicos que contribuyen a favorecer el establecimiento de A. fischeri frente a otras bacterias ambientales. De hecho, una investigación publicada en 2024 en Communications Biology identificó un mecanismo especialmente relevante para esta selección. En ella, los investigadores demostraron que una bomba de protones denominada ATPasa de tipo V (VHA) participa en la acidificación del microambiente superficial del órgano luminoso.
La actividad de esta bomba de protones contribuye a establecer un gradiente de acidificación en la mucosidad que recubre el órgano. Mientras que el agua marina presenta un pH próximo a 8,1, este puede descender hasta aproximadamente 6,4 en la mucosidad y alcanzar valores cercanos a 5,9 alrededor de los poros de entrada. Esta acidificación favorece la actividad de determinadas sustancias antimicrobianas y contribuye a establecer condiciones selectivas para el reclutamiento bacteriano.
Además, cuando los investigadores inhibieron la actividad de la ATPasa, aumentó el pH de la mucosidad y se redujo la eficiencia de la colonización por A. fischeri. De lo que se deduce que el calamar no se limita a esperar que aparezca una bacteria compatible. En su lugar, modifica activamente las condiciones químicas de su entorno inmediato para favorecer el establecimiento del simbionte adecuado.
Una vez seleccionadas, las bacterias atraviesan pequeños poros y conductos hasta alcanzar las criptas internas del órgano, donde se multiplican. Durante los días siguientes, la presencia bacteriana desencadena modificaciones en los tejidos del hospedador. Entre ellas se encuentran cambios en las células epiteliales y la regresión de las estructuras ciliadas que habían facilitado la colonización inicial.
El movimiento de los cilios situados en la superficie externa del órgano luminoso del calamar de cola corta de Hawái concentra las células de Vibrio fischeri (verde), presentes en el agua marina, formando agregados cerca del tejido que contiene los poros (rojo). Desde allí, las células bacterianas nadan hacia los poros y migran a través de un estrechamiento hasta alcanzar las criptas internas, donde una población de simbiontes prolifera y permanece durante toda la vida del hospedador.
La imagen fue obtenida mediante microscopía confocal de fluorescencia.
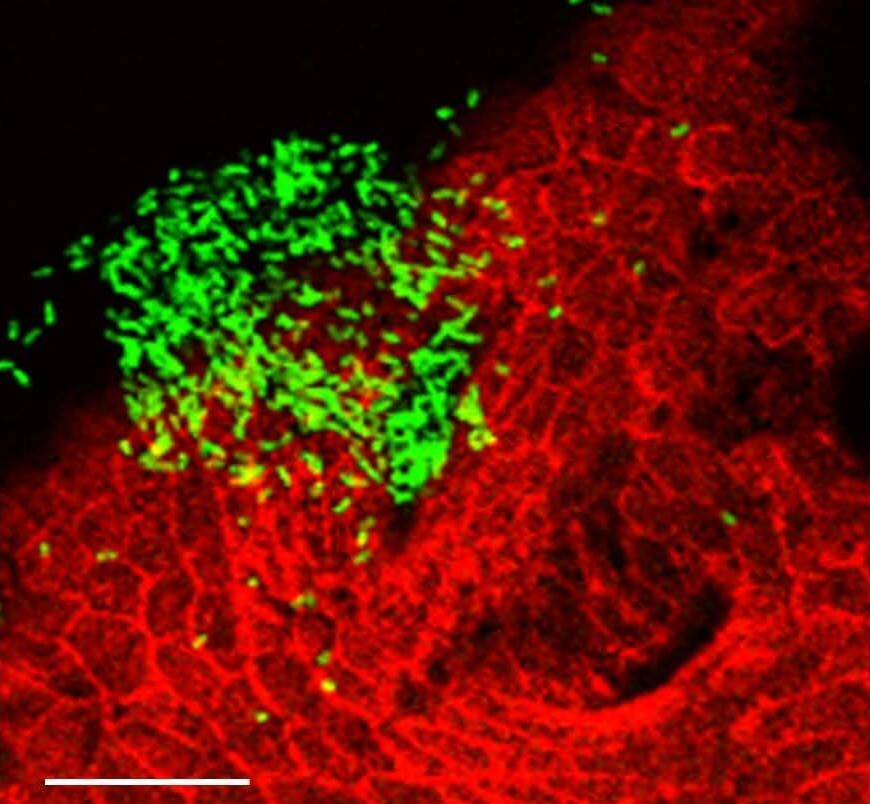
*Los colores corresponden a marcadores fluorescentes utilizados en la preparación microscópica y no a la luminosidad natural emitida por las bacterias.
De este modo, la bacteria no solo utiliza un órgano preexistente, sino que también participa en su maduración.
La bioluminiscencia: fabricar luz mediante una reacción química
La capacidad de producir luz en los organismos vivos se denomina bioluminiscencia, como también pudimos ver en el artículo dedicado a la sincronización de las luciérnagas:
 Nexus Cosmicus
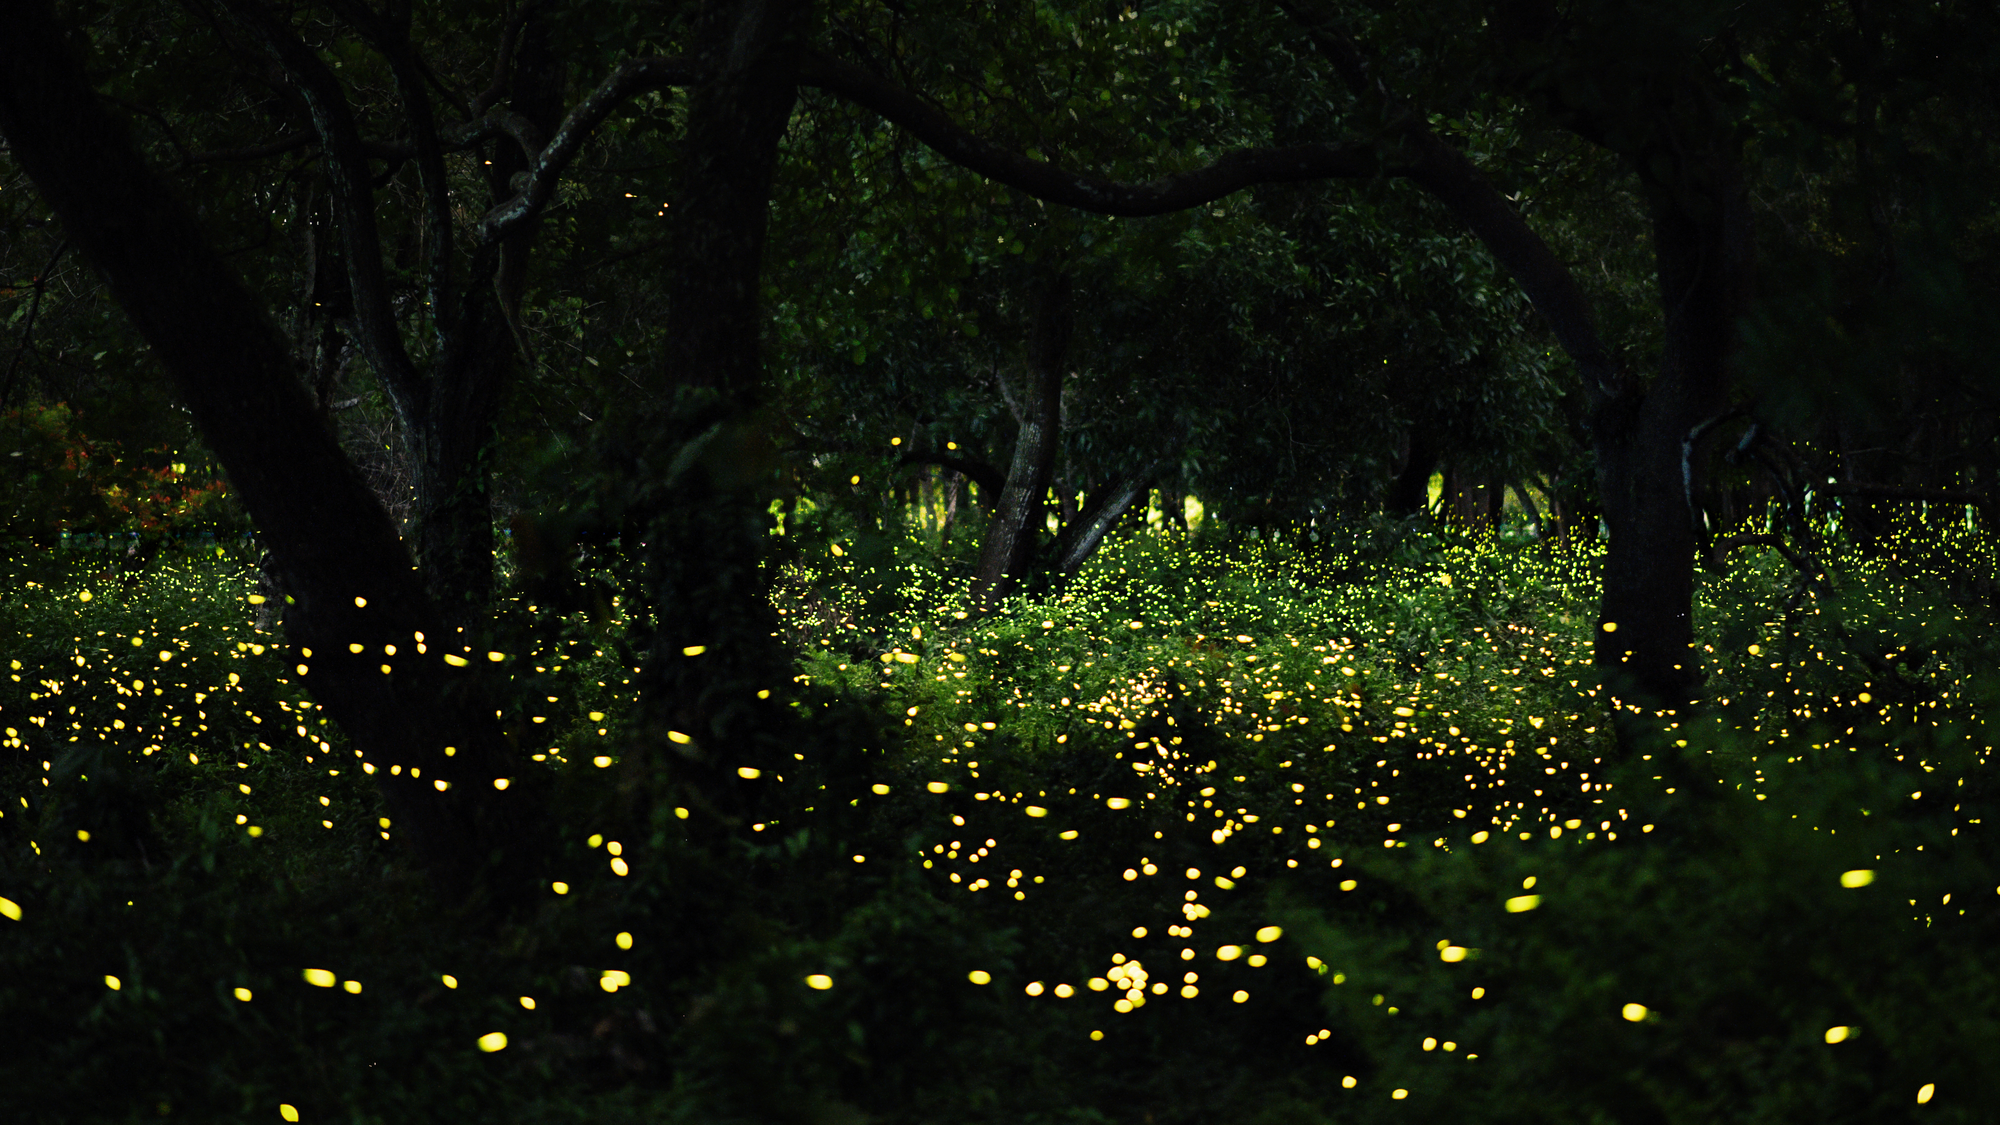
En A. fischeri, esta propiedad depende de un conjunto de genes que codifican proteínas implicadas en la producción y regulación de la emisión luminosa. Uno de sus componentes principales es la enzima luciferasa bacteriana, responsable de catalizar una reacción de oxidación que libera energía en forma de fotones. De manera simplificada, intervienen cuatro elementos:
- Una molécula de flavín mononucleótido reducido (FMNH₂).
- Un aldehído alifático de cadena larga.
- Oxígeno molecular.
- La enzima luciferasa.
La reacción genera flavín mononucleótido oxidado, un ácido graso y agua, liberando parte de la energía química en forma de luz azul verdosa.
Ecuación simplificada de la reacción, donde el último término representa la energía del fotón emitido.
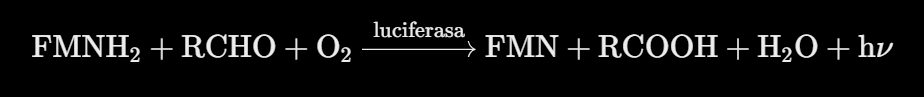
Este proceso no debe confundirse con la fluorescencia, en la que una sustancia absorbe radiación electromagnética y posteriormente la reemite. En la bioluminiscencia, la fuente energética procede directamente de una reacción química.
¿Por qué las bacterias no emiten siempre la misma cantidad de luz?
La producción de bioluminiscencia requiere recursos metabólicos. Mantener una emisión luminosa intensa cuando no resulta necesaria supondría un gasto energético considerable. Por lo que, para regular esta actividad, A. fischeri utiliza un mecanismo de comunicación química denominado quorum sensing o percepción de cuórum.
Mediante este mecanismo, las bacterias liberan al medio pequeñas moléculas señalizadoras conocidas como autoinductores. Cuando la población bacteriana aumenta, también lo hace la concentración de estas señales. Al alcanzar determinadas concentraciones, se activan mecanismos reguladores que incrementan la expresión de los genes responsables de la bioluminiscencia.
Uno de los sistemas mejor caracterizados implica las proteínas LuxI y LuxR, encargadas respectivamente de sintetizar y detectar una señal química que participa en la regulación de los genes lux.
Así, cuando las bacterias alcanzan densidades elevadas en el órgano luminoso, las condiciones favorecen una producción colectiva e intensa de luz.
Un órgano luminoso especializado
El órgano luminoso de E. scolopes no consiste simplemente en una acumulación de bacterias bioluminiscentes, sino que constituye un sistema óptico anatómicamente especializado. En torno a las criptas bacterianas se disponen tejidos reflectantes que redirigen la luz hacia la región ventral, una estructura transparente semejante a una lente que contribuye a distribuir la radiación emitida y regiones pigmentadas asociadas al saco de tinta que permiten modular su salida. De este modo, el cefalópodo puede aprovechar la bioluminiscencia de sus simbiontes y modificar la intensidad y distribución de la iluminación que abandona su cuerpo.
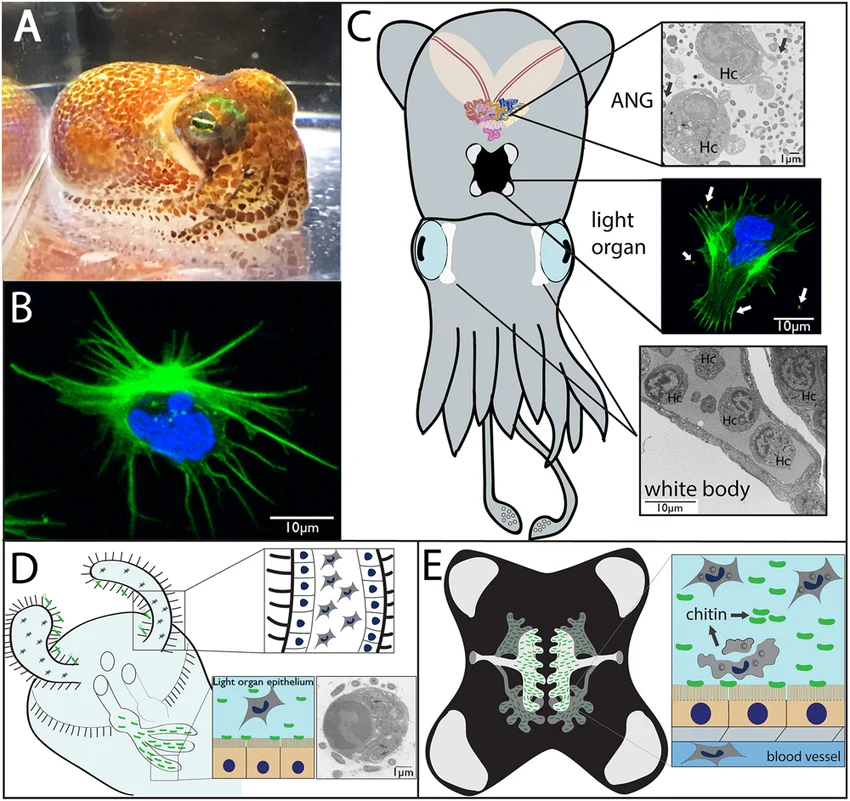
Morfología y órganos simbióticos de Euprymna scolopes.
(A) Calamar de cola corta de Hawái (Euprymna scolopes).
(B) Hemocito de E. scolopes observado mediante microscopía confocal, con tinción de actina (verde) y ADN (azul).
(C) Representación esquemática de los dos principales órganos simbióticos: el órgano luminoso (en el centro) y la glándula nidamental accesoria (ANG, en la parte superior), junto con los cuerpos blancos (situados en la parte inferior), que constituyen regiones de hematopoyesis, es decir, de producción de células sanguíneas.
Los hemocitos (Hc) procedentes del sistema vascular migran tanto hacia la glándula nidamental accesoria (micrografía electrónica de transmisión) como hacia el órgano luminoso (micrografía confocal que muestra un hemocito expulsado del órgano luminoso después del proceso de expulsión bacteriana, denominado venting), donde interactúan con las bacterias (flechas).
(D) Representación esquemática del órgano luminoso juvenil, donde se muestran los hemocitos que han migrado hacia los senos de los apéndices ciliados (recuadro ampliado).Los hemocitos también pueden migrar hacia el interior de las criptas, donde interactúan con V. fischeri y fagocitan bacterias (recuadro: micrografía electrónica de transmisión, MET, con las bacterias internalizadas señaladas mediante flechas; tomada de Nyholm y McFall-Ngai, 1998).
(E) Órgano luminoso adulto, en el que se observa la compleja organización de las criptas que albergan a V. fischeri. Estas cavidades se encuentran conectadas directamente con el medio exterior a través de dos poros situados a cada lado del órgano luminoso.Aunque los hemocitos están presentes de manera continua, cada noche aumenta su migración hacia las criptas, donde una parte de estas células experimenta lisis, liberando quitina que sirve como fuente de nutrientes para las bacterias simbiontes y favorece la bioluminiscencia (recuadro).
Un estudio experimental publicado por Jones y Nishiguchi en 2004 analizó la emisión luminosa del calamar bajo distintas condiciones de iluminación ambiental. Los resultados demostraron que E. scolopes podía modificar la intensidad luminosa que emitía a través del órgano y que esta variación estaba correlacionada con la cantidad de luz incidente. A raíz de esta investigación se proporcionaron evidencias experimentales de que el animal dispone de un sistema capaz de ajustar su iluminación ventral en respuesta al ambiente.
Debe distinguirse, sin embargo, entre demostrar ese ajuste luminoso y cuantificar directamente su efecto sobre la supervivencia frente a depredadores en condiciones naturales. La interpretación adaptativa como mecanismo antidepredador está ampliamente respaldada por la anatomía, la fisiología y el comportamiento del animal, aunque estos experimentos no equivalen por sí solos a una medida de reducción de la depredación en libertad.
Un órgano que también puede detectar la luz
Una de las características más sorprendentes de esta asociación es que el órgano luminoso no solo dispone de estructuras para emitir y modificar la luz, sino que también presenta mecanismos fisiológicos asociados a su percepción.
Un órgano luminoso (de aproximadamente 0,5 mm de diámetro) de un calamar de cola corta de Hawái (Euprymna scolopes), teñido de azul. En el momento de obtener esta imagen, las criptas presentes en los tejidos de uno solo de los lados del órgano habían sido colonizadas por células de Vibrio fischeri marcadas con proteína fluorescente verde, que pueden observarse en color verde. La imagen fue obtenida mediante microscopía confocal de fluorescencia.
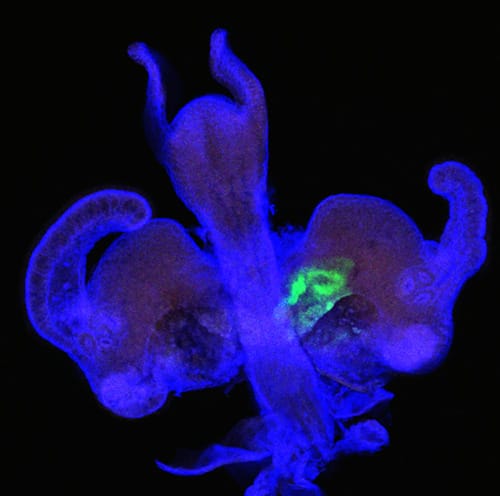
*Los colores corresponden a marcadores fluorescentes utilizados en la preparación microscópica y no a la luminosidad natural emitida por las bacterias
En 2009, una investigación publicada en Proceedings of the National Academy of Sciences identificó en los tejidos del órgano luminoso proteínas relacionadas con la fototransducción, es decir, con el proceso mediante el cual las células convierten señales luminosas en respuestas biológicas. Los investigadores también registraron respuestas eléctricas del tejido frente a estímulos luminosos, demostrando que el órgano posee capacidad fisiológica para detectar luz. Este hallazgo resulta especialmente interesante porque sugiere la existencia de mecanismos de percepción luminosa fuera de los ojos.
La hipótesis es que esta sensibilidad podría participar en la regulación de la simbiosis y en la detección de la iluminación generada por las bacterias. No obstante, la función exacta de estos mecanismos dentro del control cotidiano de la contrailuminación todavía requiere una caracterización completa.
La relación va, por tanto, más allá de alojar microorganismos bioluminiscentes: el hospedador presenta adaptaciones para interactuar fisiológicamente con la luz producida por sus simbiontes.
Entonces, llegado a este punto conviene recapitular y distinguir los dos tipos de regulación que se han descrito:
- Regulación bacteriana: el sistema LuxI/LuxR controla la expresión de genes relacionados con la bioluminiscencia en función de señales químicas y condiciones fisiológicas.
- Regulación del hospedador: el calamar puede modular la luz que abandona el órgano mediante estructuras ópticas y pigmentarias, entre otros mecanismos.
Una simbiosis sincronizada con el día y la noche
Otro dato relevante es que la relación entre el calamar y las bacterias no permanece constante durante todo el día. Presenta un ritmo diario estrechamente relacionado con la actividad del hospedador.
Al amanecer, cuando el animal regresa al fondo y se entierra en la arena, expulsa al agua marina aproximadamente entre el 90 y el 95 % de las bacterias que habitan en su órgano luminoso. Este fenómeno, conocido como venting, constituye una de las características más destacadas de la asociación. La pequeña población bacteriana que permanece en las criptas vuelve a multiplicarse durante las horas siguientes.
Al llegar la noche, cuando el calamar abandona su refugio para alimentarse, la población bacteriana se ha recuperado y el órgano vuelve a disponer de una elevada capacidad de emisión luminosa. Este ciclo no depende únicamente de la cantidad de bacterias presentes. También se producen cambios diarios en la fisiología del hospedador y en el metabolismo microbiano, incluyendo modificaciones en la disponibilidad de nutrientes y oxígeno.
La regulación periódica permite mantener una asociación estable en la que ambos organismos ajustan su actividad a un ciclo ambiental compartido. Además, las bacterias expulsadas regresan al medio marino, donde pueden contribuir a la población ambiental a partir de la cual se establecen nuevas asociaciones.
Más allá del camuflaje: un modelo para comprender la simbiosis
Durante décadas, la asociación entre E. scolopes y A. fischeri se ha utilizado como modelo experimental para investigar las interacciones entre animales y microorganismos. Su principal ventaja reside en la relativa simplicidad del sistema: un hospedador, un simbionte bacteriano bien caracterizado y un órgano cuya colonización puede observarse desde sus primeras etapas.
Gracias a ello, los investigadores pueden estudiar cómo se seleccionan microorganismos beneficiosos, cómo modifican el desarrollo de los tejidos animales y cómo se mantiene una asociación estable durante largos periodos.
Estos mecanismos poseen interés más allá de los cefalópodos, porque otros animales también establecen relaciones estrechas con comunidades microbianas que influyen en su fisiología y desarrollo.
Aunque no deben extrapolarse directamente los resultados de este sistema a relaciones mucho más complejas, como las que existen en la microbiota humana, el modelo proporciona herramientas fundamentales para comprender cómo se establecen y regulan las asociaciones entre hospedadores y microorganismos.
Sobrevivir gracias a las capacidades de otro organismo
La relación entre el calamar de cola corta de Hawái y sus bacterias bioluminiscentes demuestra que la cooperación evolutiva puede dar lugar a funciones extraordinariamente especializadas. En este caso, el cefalópodo proporciona un entorno protegido, recursos metabólicos y mecanismos de selección que favorecen el establecimiento de su simbionte. Las bacterias, por su parte, aportan una capacidad bioquímica de producción luminosa que el hospedador utiliza para modificar su apariencia frente al entorno.
Lo especialmente significativo es que la asociación no se limita a intercambiar recursos. Ambos organismos participan en una interacción coordinada que afecta al desarrollo anatómico, la expresión genética, el metabolismo y los ritmos diarios. Si bien la contrailuminación constituye el resultado más visible de esa cooperación, detrás de ella existe una compleja red de mecanismos de reconocimiento y regulación.
En este caso, la evolución no ha dotado al animal de la capacidad de fabricar por sí mismo una luz que lo ampare en sus salidas nocturnas, sino una asociación entre organismos que, al combinar sus capacidades, desempeñan una función que ninguno realiza de forma equivalente por separado.
Otro ejemplo más de cómo la supervivencia no depende exclusivamente de las adaptaciones de un organismo aislado, sino también de las relaciones que es capaz de establecer con otras formas de vida.
Recursos
https://doi.org/10.1038/s41579-021-00567-y
https://doi.org/10.1038/s41579-021-00557-0
https://doi.org/10.1007/s00227-003-1285-3
https://doi.org/10.1038/s42003-024-07348-2
https://doi.org/10.1073/pnas.0904571106
https://doi.org/10.2307/1542815
https://www.ncbi.nlm.nih.gov/Taxonomy/Browser/wwwtax.cgi?id=668
https://en.wikipedia.org/wiki/Counter-illumination
https://www.sciencedirect.com/science/article/abs/pii/S0022098110000948
https://pmc.ncbi.nlm.nih.gov/articles/PMC7341941/
https://sciety.org/articles/activity/10.1101/2025.10.29.685447
https://www.sciencedirect.com/science/article/abs/pii/S0304416508000317
 R. D. Harper